
Enzymaktivitet regleras genom förändringar i substratbindning, katalytisk omsättning, konformation och mängden aktivt enzym. Konkurrerande, unkompetitiv, blandad och ren icke-konkurrerande hämning definieras av hämmarens bindning till fritt enzym respektive enzym–substratkomplex, medan allosteri är ett strukturellt och fysiologiskt begrepp som inte motsvarar en enskild kinetisk klass. Mekanismen avgör hur effekten påverkas av substratkoncentration, tid och enzymomsättning och därmed hur experimentella data och läkemedelseffekter ska tolkas.
Grundbegrepp och avgränsning
Enzymhämning innebär att en molekyl minskar ett enzyms katalytiska aktivitet genom specifik bindning till enzymet, till ett enzym–substratkomplex eller genom kemisk modifiering av enzymet. Resultatet kan vara minskad substratbindning, lägre sannolikhet för katalys, långsammare produktfrisättning eller minskad koncentration av katalytiskt kompetent enzym. Hämmaren kan vara en fysiologisk metabolit, ett regulatoriskt protein, ett läkemedel, ett toxin eller ett experimentellt verktyg.
Detta ska skiljas från ospecifik inaktivering genom exempelvis värme, extremt pH, organiska lösningsmedel eller detergenter. Sådan påverkan kan denaturera proteinet, rubba oligomerisering eller fälla ut enzymet och påverkar ofta många proteiner samtidigt. En irreversibel hämmare är däremot vanligen strukturellt och kemiskt riktad mot en viss enzymklass eller reaktiv aminosyra i en definierad bindningsmiljö; irreversibilitet är således inte synonymt med denaturering.
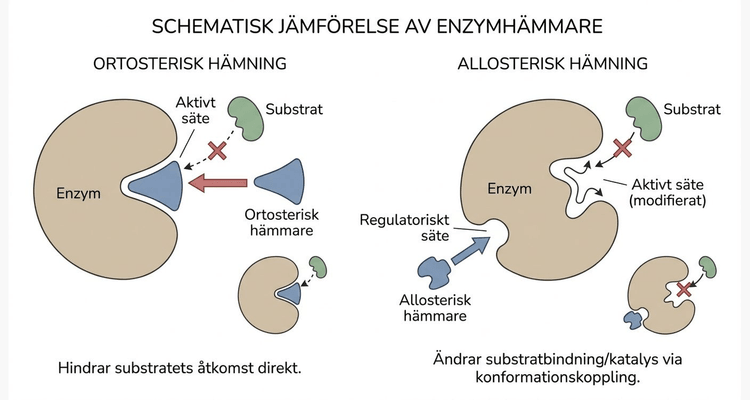
En ortosterisk hämmare binder i substratets aktiva säte. En allosterisk hämmare binder på en annan plats och påverkar aktivitet genom konformationskoppling till det katalytiska sätet. Strukturell bindningsplats och kinetisk hämningsklass måste hållas isär: en allosterisk hämmare kan kinetiskt framstå som konkurrerande om den stabiliserar en konformation som inte binder substrat, medan bindning utanför det aktiva sätet kan ge blandad, unkompetitiv eller partiell hämning.
Affinitet anger hur starkt hämmaren binder och kan uttryckas med exempelvis dissociationskonstanten eller, inom en kinetisk modell, . Selektivitet beskriver preferensen för ett mål framför andra enzymer, isoformer eller proteiner. Hämmande effekt är den faktiska aktivitetsminskningen vid en viss koncentration och kan vara fullständig eller partiell. En hämmare kan därför ha hög affinitet men låg funktionell effekt, eller hög potens i ett isolerat system men bristande selektivitet i en organism.
Normal enzymkinetik som referens
För en enkel reaktion gäller:
Under initialhastighetsbetingelser är produktkoncentrationen så låg att återreaktionen från produkt kan försummas. Med steady state-antagandet sätts bildningshastigheten för lika med dess förbrukningshastighet:
Michaeliskonstanten definieras då som
och eftersom erhålls
Reaktionshastigheten är . Med följer Michaelis–Menten-ekvationen:
Initialhastigheten bestäms från den tidiga, linjära delen av produktkurvan innan substratdepletion, produktinhibition, enzymförlust eller reversering påverkar förloppet. Vid är . När är enzymet i huvudsak substratmättat och närmar sig .
| Parameter | Definition | Tolkning |
|---|---|---|
| Maximal hastighet vid substratmättnad | Proportionell mot mängden aktivt enzym | |
| som ger i enkel Michaelis–Menten-kinetik | Kinetisk konstant, inte generellt en ren affinitetskonstant | |
| Maximalt antal katalytiska omsättningar per aktivt säte och tidsenhet | ||
| Kvoten mellan omsättningstal och | Katalytisk effektivitet vid låg | |
| för enkel bindning | Termodynamisk dissociationskonstant |
Endast när produktbildningen är mycket långsammare än dissociationen av substrat, , närmar sig substratets . Ett lågt ska därför inte automatiskt beskrivas som ”hög affinitet”. Temperatur, pH och jonstyrka påverkar jonisering, konformation och hastighetskonstanter. Metalljoner, koenzymer och andra kofaktorer kan vara nödvändiga för aktivitet, medan oligomerisering kan skapa kooperativitet som gör Michaelis–Menten-modellen otillräcklig.
Översikt över reversibla hämningsmekanismer
I den generella modellen kan hämmaren binda både fritt enzym och enzym–substratkomplexet . Dissociationskonstanterna betecknas för och för :
Med
blir hastighetsekvationen
Därmed är
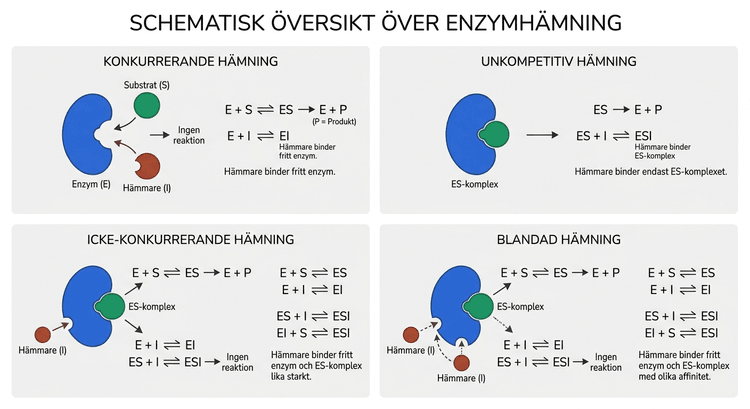
De klassiska hämningsformerna är specialfall av denna modell. Klassifikationen avser vilka enzymformer hämmaren binder och förutsätter bland annat snabb jämviktsinställning, fullständig inaktivitet hos hämmarbundna komplex och enkel Michaelis–Menten-kinetik.
| Hämningsform | Bindning | Effekt av ökad | ||
|---|---|---|---|---|
| Konkurrerande | Endast | Ökar | Oförändrat | Hämningen motverkas |
| Unkompetitiv | Endast | Minskar | Minskar proportionellt | Hämningen förstärks |
| Blandad | och , olika affinitet | Ökar eller minskar | Minskar | Kan inte helt undanträngas |
| Ren icke-konkurrerande | och , lika affinitet | Oförändrat | Minskar | Relativ hämning oberoende av i idealmodellen |
Konkurrerande hämning
Vid konkurrerande hämning binder hämmaren fritt enzym och bildar , medan och är ömsesidigt uteslutande. Mekanismen skrivs:
Eftersom hämmaren inte binder är i praktiken oändligt och . Hastighetsekvationen blir
så att
Hög substratkoncentration förskjuter ockupationen mot , och samma maximala hastighet kan teoretiskt uppnås. Kliniskt innebär det att effekten av en konkurrerande hämmare kan bero på fysiologisk substratnivå. ATP-kompetitiva kinashämmare måste exempelvis verka i celler där ATP-koncentrationen är hög, vilket ställer större krav på bindningsaffinitet och intracellulär exponering än en analys vid låg ATP-koncentration antyder.
Konkurrerande kinetik behöver inte betyda att hämmaren fysiskt upptar substratets bindningsyta. En allosterisk ligand kan stabilisera en enzymkonformation som inte kan binda substrat och därigenom ge samma kinetiska mönster. Omvänt kan en ligand i ett stort aktivt säte tillåta samtidig bindning av substratets andra del och därmed ge blandad kinetik.
Farmakologiska exempel är statiner, som konkurrerar vid HMG-CoA-reduktas och minskar hepatisk kolesterolsyntes; den efterföljande uppregleringen av LDL-receptorer sänker LDL-kolesterol. Metotrexat hämmar dihydrofolatreduktas och minskar tillgången på tetrahydrofolat för nukleotidsyntes. Sulfonamider konkurrerar med para-aminobensoesyra vid bakteriellt dihydropteroatsyntas. Många kinashämmare binder ATP-fickan, ofta med ytterligare kontakter som stabiliserar en viss aktiv eller inaktiv kinaskonformation.
Unkompetitiv hämning
En unkompetitiv hämmare binder endast efter att substratet har bundit:
Komplexet är i grundmodellen katalytiskt inaktivt. Bindningsytan kan bildas eller exponeras genom en substratinducerad konformationsändring. Mekanismen förekommer särskilt i flersubstratreaktioner, där en hämmare kan binda en enzymform som uppstår först efter bindning av det första substratet.
Eftersom hämmaren inte binder fritt enzym är oändligt och . Då gäller:
Båda parametrarna minskar således med samma faktor. Michaelis–Menten-kurvan förskjuts nedåt och åt vänster. I ett Lineweaver–Burk-diagram är linjerna parallella eftersom kvoten , och därmed lutningen, är oförändrad.
Ökad substratkoncentration undantränger inte hämmaren. Tvärtom ökar mängden , vilket skapar mer bindningsbart mål för hämmaren och kan förstärka hämningen. Det lägre skenbara betyder inte att fritt enzym har fått högre substrataffinitet; det avspeglar att fångas i och att jämvikten dras mot substratbundna enzymformer. Produktinhibition och inhibitorer i ordnade flersubstratreaktioner kan uppvisa unkompetitiv kinetik relativt det substrat som binder först.
Blandad och ren icke-konkurrerande hämning
Vid blandad hämning binder hämmaren både och , men med olika affinitet, det vill säga . Hämmarbundna enzymformer bidrar inte till den normala produktbildningen. Eftersom kan fångas som minskar alltid det skenbara :
Effekten på beror på bindningspreferensen. Om hämmaren föredrar fritt enzym är , varför ökar. Om den föredrar är inte uppfyllt; i stället blir , och minskar. Substrat kan motverka den komponent som beror på bindning till , men kan inte eliminera bindningen till .
Ren icke-konkurrerande hämning är specialfallet , alltså . Då minskar , medan förblir oförändrat. Detta är en idealiserad symmetri och bör inte användas som allmän beteckning för all hämning utanför det aktiva sätet.
Ett oförändrat skattat är inte ensamt bevis för ren icke-konkurrerande mekanism. Parameterosäkerhet, begränsat substratintervall, partiell aktivitet, allosteri eller motverkande effekter på bindning och katalys kan ge samma observation. Mekanismen bör styrkas genom global modellanpassning och, om möjligt, oberoende mätning av hämmarens bindning till och .
Allosterisk reglering och kooperativitet
Allosteriska effektorer binder på ett regulatoriskt säte och förändrar sannolikheten för enzymets olika konformationstillstånd. Signalen fortplantas genom förändrade kontakter, dynamik och energilandskap från det regulatoriska till det katalytiska sätet. Mekanismen förekommer i oligomera enzym, där subenheter påverkar varandra, men även i monomera proteiner med kopplade domäner.
Homotropa effektorer är identiska med substratet: bindning av en substratmolekyl påverkar bindning eller katalys av nästa. Heterotropa effektorer är andra molekyler, exempelvis ATP, AMP, citrat eller en signalmetabolit. Positiv kooperativitet ger ökande affinitet eller aktivitet när fler säten ockuperas, medan negativ kooperativitet ger motsatt förändring.
Kooperativa enzym följer ofta en sigmoid hastighetskurva snarare än en hyperbel. Därför används , den substratkoncentration som ger halva den maximala hastigheten, i stället för . Hill-ekvationen kan skrivas
Hillkoefficienten är förenlig med positiv kooperativitet, med icke-kooperativt beteende och med negativ kooperativitet eller heterogena bindningsställen. är emellertid ett empiriskt lutningsmått och motsvarar inte generellt antalet subenheter eller bindningsställen.
MWC-modellen beskriver ett concerted skifte där alla subenheter växlar mellan konformationstillstånd och ligander stabiliserar ett av dem. KNF-modellen tillåter sekventiella, ligandinducerade konformationsförändringar i en subenhet i taget. Verkliga enzym kan kombinera egenskaper från båda modellerna, uppvisa flera mellanformer och ha olika koppling mellan bindning och katalys. Modellerna är därför mekanistiska approximationer, inte fullständiga strukturbeskrivningar.
Metabol återkoppling och fysiologisk flödeskontroll
Vid slutproduktshämning hämmar en metabolit ett tidigare steg i den väg som producerar metaboliten. Regleringen riktas ofta mot ett tidigt, fysiologiskt irreversibelt och starkt reglerat steg. Därmed kan hela syntesvägens flöde minskas utan att varje efterföljande enzym hämmas, samtidigt som prekursorer och energi sparas.
Fosfofruktokinas-1, PFK-1, katalyserar omvandlingen av fruktos-6-fosfat till fruktos-1,6-bisfosfat i glykolysen. ATP fungerar både som substrat och som negativ allosterisk effektor: när energitillgången är hög stabiliserar ATP en mindre aktiv konformation. Citrat signalerar tillgång på intermediärer och förstärker hämningen. AMP och ADP signalerar lägre energiladdning och motverkar ATP-effekten. Fruktos-2,6-bisfosfat är en stark aktivator som ökar PFK-1:s respons på fruktos-6-fosfat och reducerar ATP-hämningen; dess koncentration regleras hormonellt via det bifunktionella enzymet PFK-2/FBPase-2.
Aspartattranskarbamoylas, ATCase, reglerar ett tidigt steg i bakteriell pyrimidinsyntes. Slutprodukten CTP binder regulatoriska subenheter och stabiliserar ett mindre aktivt tillstånd, varvid syntesen bromsas när pyrimidintillgången är hög. Regleringen samordnar nukleotidproduktion med cellens behov snarare än att enbart reagera på substrattillgång.
Uttrycket ”hastighetsbegränsande enzym” kan vara pedagogiskt men är ofta fysiologiskt förenklat. Enligt metabol kontrollanalys fördelas flödeskontrollen mellan flera enzym, transportörer och substratförsörjande steg. Ett enzyms flödeskontrollkoefficient anger den relativa förändringen i pathway-flöde vid en liten relativ förändring av enzymaktiviteten. Kontrollfördelningen kan ändras med nutrition, hormonsignalering, sjukdom och läkemedelsbehandling; hög reglerbarhet betyder därför inte automatiskt att enzymet ensamt bestämmer flödet.
Övriga former av enzymreglering
Ligandbindning och allosteri verkar ofta snabbt eftersom redan befintliga enzym växlar mellan aktivitetstillstånd. Effekter kan uppträda inom millisekunder till sekunder och är lämpade för reglering av metabolism, jonflöden och signaltransduktion. Effekten upphör när ligandkoncentrationen minskar eller signalen avlägsnas, förutsatt att bindningen är reversibel.
Reversibel kovalent modifiering, särskilt fosforylering av serin-, treonin- eller tyrosinrester, ändrar laddning, struktur, interaktionsytor eller subcellulär lokalisering. Kinaser och fosfataser gör modifieringen reversibel, och förloppet sker typiskt under minuter till timmar. Acetylering, ADP-ribosylering och redoxmodifiering är andra regleringsformer. Modifieringen kan aktivera ett enzym i ett sammanhang men hämma en homolog i ett annat.
Proteolytisk aktivering av zymogener är däremot i regel irreversibel för den enskilda proteinmolekylen. Koagulationsfaktorer och pankreatiska proteaser syntetiseras som inaktiva prekursorer för att begränsa skadlig proteolys. Autoinhibitoriska domäner kan blockera aktiva säten intramolekylärt tills en ligand, fosforylering eller proteolys frigör dem. Regulatoriska inhibitorproteiner, såsom proteashämmare och cyklinberoende kinashämmare, kan på motsvarande sätt binda och avskärma katalytiska ytor.
Kompartmentalisering separerar enzym från substrat, produkt eller kofaktor och reglerar därmed aktiviteten utan att enzymets inneboende kinetik måste ändras. På längre tidsskala, vanligen timmar till dygn, regleras enzymmängden genom transkription, translation, ubiquitinering, lysosomal nedbrytning och proteasomal proteolys. Denna långsamma reglering bestämmer kapaciteten , eftersom .
Irreversibel och tidsberoende hämning
Många irreversibla hämmare verkar i två steg:
Först bildas ett selektivt, reversibelt komplex. Därefter uppstår en stabil kemisk modifiering, ofta genom att en nukleofil serin- eller cysteinrest angriper en elektrofil grupp i hämmaren. Tyrosin, treonin eller lysin kan också modifieras beroende på enzymets mikromiljö.
beskriver koncentrationsberoendet för det initiala komplexet, medan är den maximala första ordningens hastighetskonstant för inaktiveringssteget. Vid en enkel tvåstegsmodell gäller
Kvoten , med enhet koncentration·tid, uttrycker inaktiveringseffektiviteten vid låg hämmarkoncentration. Ett enstaka IC50-värde är otillräckligt eftersom utfallet varierar med preinkubations- och analystid.
Mekanismbaserade hämmare, ”självmordssubstrat”, bearbetas av målenzymets egen katalytiska apparat till en reaktiv intermediär som sedan inaktiverar enzymet. Detta kan ge hög selektivitet: kovalens uppstår först efter korrekt bindning, orientering och kemisk aktivering, inte enbart genom ospecifik reaktivitet.
Acetylsalicylsyra acetylmodifierar cyklooxygenas och hämmar prostanoidbildning. I trombocyter kvarstår COX-1-hämningen eftersom cellerna saknar kärna och har mycket begränsad möjlighet att nybilda enzym. β-laktamantibiotika acylerar den aktiva serinen i bakteriella transpeptidaser och hindrar korsbindning av peptidoglykan. Organofosfater fosforylerar acetylkolinesteras; acetylkolin ansamlas då vid kolinerga synapser med muskarina, nikotina och centrala symtom. Effektdurationen kan i samtliga fall styras mer av återbildning av aktivt enzym än av läkemedlets aktuella plasmakoncentration.
Specialfall: partiell, substrat-, produkt- och slow-binding-hämning
Vid partiell hämning har det hämmarbundna ternära komplexet kvarvarande katalytisk aktivitet. När hämmaren mättar sitt bindningsställe planar aktiviteten därför ut över noll. En modell som antar fullständig inaktivitet kommer att ge missvisande , och . Partiell aktivering är den motsatta möjligheten: ligandbindning ökar omsättningen i det modifierade komplexet.
Substrathämning uppkommer när höga substratkoncentrationer ockuperar ett andra, inhiberande säte eller bildar ett improduktivt komplex. En enkel modell är
där hastigheten först ökar men därefter minskar vid hög . Fenomenet får inte misstolkas som enzymförlust eller mätinstrumentets mättnad. Produktinhibition kan bero på att produkten återbinder till det aktiva sätet eller till en mellanform av enzymet och bidrar både till metabol reglering och avvikelse från initialhastighetsbetingelser.
I flersubstratreaktioner är hämningsklassen alltid definierad relativt ett specificerat substrat medan övriga substrat hålls under kontrollerade förhållanden. Samma hämmare kan vara konkurrerande mot substrat A men unkompetitiv eller blandad mot substrat B. Mönstret beror på om mekanismen är ordnat sekventiell, slumpmässigt sekventiell eller ping-pong och på vilka enzymformer hämmaren kan binda.
Tight-binding föreligger när hämmarens affinitet är så hög att enzymkoncentrationen inte kan försummas jämfört med . En betydande andel av den tillsatta hämmaren binds då, varför fri är lägre än total . Slow-binding innebär att hämningen utvecklas gradvis, ofta genom
där det andra steget är en långsam men reversibel konformationsisomerisering. Dessa mekanismer kan skenbart likna irreversibel hämning och kräver tidsupplösta progresskurvor och återhämtningsförsök efter dilution eller dialys.
Mätning, kurvanpassning och kvantitativa potensmått
En robust kinetisk analys omfattar flera substratkoncentrationer både under och över , kombinerade med flera hämmarkoncentrationer. Initialhastigheter ska bestämmas inom ett intervall där produktbildningen är linjär och substratförbrukningen liten. Negativa kontroller, lösningsmedelskontroller och kontroll av enzymets stabilitet utan hämmare behövs. Preinkubation med varierande längd avslöjar långsam eller tidsberoende hämning.
Global icke-linjär regression, där samtliga datapunkter samtidigt anpassas till konkurrerande, blandad eller annan mekanistisk modell, är att föredra framför enbart lineariserade diagram. Lineweaver–Burk-, Dixon- och Hanes–Woolf-diagram kan vara illustrativa, men reciprok transformation ger oproportionerligt stor vikt åt osäkra mätningar vid låg substratkoncentration. Modellval bör baseras på residualer, parameterosäkerhet och biologisk rimlighet, inte bara på visuella linjekorsningar.
| Mått | Vad det beskriver | Viktiga begränsningar |
|---|---|---|
| Direkt bindningsaffinitet vid jämvikt | Säger inte nödvändigtvis hur mycket katalysen påverkas | |
| , | Hämmarbindning inom en specificerad kinetisk modell | Modell- och mekanismberoende |
| IC50 | Koncentration som ger 50 % hämning i en viss analys | Beror på , analystid, enzymkoncentration och assayformat |
| Maximal hastighet för tidsberoende inaktivering | Beskriver inte initial bindningsaffinitet | |
| Effektivitet för tvåstegs inaktivering | Kräver tidsupplösta data och korrekt modell |
För enkel konkurrerande hämning under angivna antaganden gäller Cheng–Prusoff-sambandet:
IC50 är alltså inte en inneboende molekylkonstant. Om substratkoncentrationen ökas stiger IC50 för en konkurrerande hämmare, trots att den molekylära affiniteten är oförändrad.
Vid tight-binding måste massbalansen för både enzym och hämmare inkluderas, vanligen med Morrison-ekvationen eller motsvarande kvadratisk bindningsmodell. Total inhibitor kan då inte ersätta fri inhibitor i de klassiska ekvationerna. För tidsberoende hämmare måste assaytid, preinkubation, substratskydd och eventuell reversibilitet rapporteras; annars kan två laboratorier få olika IC50 för samma substans utan att något av värdena är tekniskt felaktigt.
Experimentella felkällor och mekanistisk feltolkning
Substratdepletion och produktackumulation gör att en progresskurva böjer av även utan hämmare. Enzymet kan dessutom adsorberas till plast, förlora kofaktor, oxideras eller dissociera till inaktiva subenheter. Om dessa effekter inte kontrolleras kan tidsberoende aktivitetsförlust felaktigt klassificeras som irreversibel eller slow-binding-hämning.
Fluorescerande eller absorberande testsubstanser kan ge inner-filter-effekt, släcka fluoroforen eller själva bidra till signalen. I kopplade analyser kan substansen hämma hjälpenzymet snarare än målenzymet. Kontroller med tillsatt produkt, alternativ detektionsmetod och analys av enskilda kopplingssteg är därför centrala.
Promiskuösa småmolekylära hämmare kan bilda kolloidala aggregat som adsorberar enzym. Typiska varningssignaler är brant koncentrationsrespons, känslighet för detergent och starkt beroende av enzymkoncentration. Andra ospecifika mekanismer är proteinbindning, kemisk redoxreaktivitet, reaktion med tiolgrupper och kelatering av metallkofaktorer. En metallkelator kan exempelvis minska aktiviteten hos flera metalloenzym utan att binda ett definierat allosteriskt säte.
Skenbart oförändrat bevisar inte ren icke-konkurrerande hämning. Ett smalt substratintervall kan göra dåligt bestämt, och korrelationen mellan skattat och kan maskera en verklig blandad mekanism. Allosteri, kooperativitet, flersubstratkinetik, partiell aktivitet och långsam jämviktsinställning kräver alternativa modeller. Oberoende bindningsdata från exempelvis kalorimetri, ytbaserade metoder eller strukturanalys kan visa om hämmaren binder , substratbundna former eller flera konformationstillstånd.
Klinisk och farmakologisk relevans
Enzymkinetiken kopplar molekylär bindning till dos–respons, men sambandet är inte direkt. Klinisk effekt beror på fri läkemedelskoncentration i målvävnaden, membranpassage, metabolism, proteinbindning, substratnivå, målets omsättningshastighet och hur stor del av enzymaktiviteten som måste hämmas för att påverka fysiologiskt flöde. Ett lågt i en ren enzymanalys garanterar därför varken klinisk effekt eller lämplig dos.
ACE-hämmare blockerar det zinkberoende angiotensinkonverterande enzymet, minskar bildningen av angiotensin II och reducerar nedbrytningen av bradykinin. Den senare mekanismen bidrar både till vasodilatation och till biverkningar som hosta och angioödem. Statiner hämmar HMG-CoA-reduktas, men deras kliniska LDL-sänkning förstärks av kompensatoriskt ökat uttryck av hepatiska LDL-receptorer. Farmakodynamiken omfattar därmed mer än den omedelbara enzymhämningen.
PDE5-hämmare minskar hydrolysen av cGMP och förlänger NO-medierad glattmuskelrelaxation. Kombination med nitrater kan ge uttalad hypotension eftersom båda interventionerna ökar samma signalväg. HIV-proteashämmare blockerar klyvningen av virala polyproteiner och ger icke-infektiösa viruspartiklar; vissa hämmar samtidigt humana läkemedelsmetaboliserande enzym och orsakar betydande interaktionsrisk.
ATP-kompetitiva kinashämmare används bland annat vid malignitet och inflammatorisk sjukdom. Selektivitet är särskilt svår eftersom många kinaser har homolog ATP-bindningsficka. Off-target-hämning kan därför ge hud-, lever-, benmärgs- eller kardiovaskulär toxicitet. Konformationsselektiva och allosteriska hämmare kan förbättra selektiviteten, men mutationer i bindningsfickan eller stabilisering av en alternativ konformation kan ge resistens.
Acetylkolinesterashämmare omfattar reversibla substanser, långsamt reversibla karbamater och irreversibla organofosfater. Ökad acetylkolinkoncentration kan vara terapeutisk, exempelvis vid neuromuskulär signalering eller kognitiv symtombehandling, men överdriven hämning ger kolinerg toxicitet med bronksekretion, bradykardi, gastrointestinal hyperaktivitet, fascikulationer, muskelsvaghet och centralnervösa symtom. Mekanism och tidsförlopp avgör möjligheten till spontan återhämtning och antidotbehandling.
Resistens kan uppstå genom målmutation som sänker hämmaraffiniteten, överuttryck av målenzymet, ökad efflux, enzymatisk läkemedelsinaktivering eller aktivering av alternativa metabola vägar. Biokemisk potens måste därför värderas tillsammans med målselektivitet, exponering och systemets flödeskontroll. Den kliniskt bästa hämmaren är inte nödvändigtvis den med lägst , utan den som ger tillräcklig och varaktig målmodulering i rätt vävnad med acceptabel säkerhetsmarginal.
Källor
- Enzyme inhibitor
- Enzyme inhibitor
- Bild: File:Binding sites enzyme inhibitors.svg — Sponk (talk), Public domain
- Bild: File:Enzyme inhibitor types.svg — Boghog, CC BY-SA 4.0